脂肪细胞中的RNA调度员
发布时间:2026-11-03
人每天摄入的食物经过消化吸收后,一部分能量会被及时利用,暂时用不完的部分则主要储存在脂肪组织中。正常情况下,脂肪细胞的储存和动员处于相对平衡的状态。若能量长期摄入过多,脂肪细胞会逐渐增大,新的脂肪细胞也会形成。此时,体重增加只是表面变化,慢性炎症、胰岛素敏感性下降、脂肪肝及心血管疾病风险也可能随之升高。世界卫生组织公布的数据显示,2022年全球约每8个人中就有1人处于肥胖状态,其中成年人肥胖率较1990年增加了一倍以上[1]。这也说明,肥胖不能简单归因于进食过多或运动不足,其发生还受到遗传背景、神经内分泌、代谢状态和生活环境等多种因素影响。
过去,脂肪组织常被理解为单纯储存能量的场所。现在看来,这种认识并不完整。白色脂肪细胞主要储存脂质;棕色脂肪细胞含有较多线粒体,可以将部分能量转化为热;在寒冷、运动等刺激下,一部分白色脂肪细胞还可呈现米色脂肪细胞的特征。脂肪组织还会分泌多种信号分子,并与大脑、肝脏、骨骼肌和免疫系统保持联系。从前体细胞分化到成熟脂肪细胞储存或释放脂肪酸,每一步都需要较为精细的调控。
RNA如何指挥脂肪细胞
细胞内的调控信息并不全部依赖蛋白质完成。按照经典的生命信息传递过程,DNA中的遗传信息先被转录成RNA,其中一部分RNA再参与蛋白质合成。不过,细胞中还存在大量不编码蛋白质的RNA。长链非编码RNA简称lncRNA,通常长度超过200个核苷酸,整体上不具备常规的蛋白质编码能力。早期研究曾将它们看作转录过程中产生的背景信号。随着测序技术和功能实验的发展,越来越多证据表明,部分lncRNA能够直接参与基因表达调控。
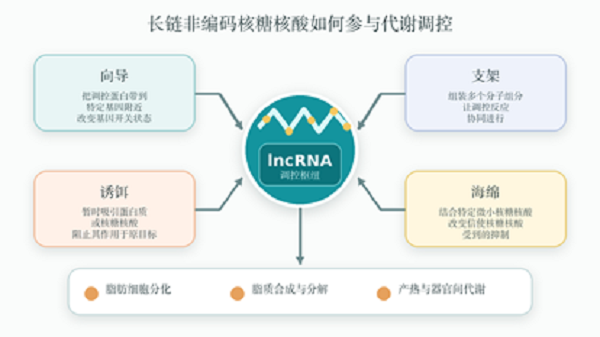
lncRNA并没有固定的工作方式。有些lncRNA可以把调控蛋白带到特定的DNA区域,发挥类似向导的作用;有些能够连接多个分子,为调控反应提供支架;还有一些会结合蛋白质、RNA或微RNA,从而改变这些分子原有的作用[2]。向导、支架、诱饵和海绵等称呼便于理解,但并不能概括所有情况。lncRNA的作用通常具有细胞和组织特异性,同一个分子在不同发育阶段、营养状态或疾病条件下,也可能表现出不同功能。
脂肪细胞分化研究较早揭示了lncRNA的调控作用。2013年,研究人员连续观察前体脂肪细胞向成熟脂肪细胞转变的过程,发现许多lncRNA的表达会随着分化阶段发生变化。当其中部分lncRNA被敲低后,脂肪细胞形成受到明显影响[3]。这说明脂肪生成并非只由少数蛋白质转录因子决定,RNA层面的调控同样参与其中。此后,研究者开始从不同角度寻找与脂肪细胞功能有关的lncRNA。
后续研究进一步关注lncRNA对脂肪细胞功能的影响。已有研究发现,不同lncRNA可参与脂滴形成、脂肪酸分解以及棕色脂肪产热等过程。对棕色脂肪转录图谱的分析显示,多条lncRNA会在棕色脂肪细胞成熟过程中发生变化,其中部分分子能够调节产热相关基因[4]。在人类脂肪细胞中,也发现了与线粒体功能和产热有关的lncRNA[5]。需要注意的是,人和实验动物之间存在明显差异,小鼠中的研究结果仍需经过人体细胞和临床研究验证。
判断一条lncRNA的作用,不能只看它是促进还是抑制脂肪形成。脂肪组织本身是维持人体正常生理活动所必需的。皮下脂肪在一定范围内扩张,可以暂时容纳多余能量;当这种储存能力达到极限时,脂质可能沉积到肝脏、骨骼肌等部位,进而影响器官功能。因此,同一条lncRNA对代谢的影响,需要结合脂肪分布、细胞状态和全身代谢指标综合判断。在一种情况下有利的调节,在另一种情况下未必仍然有利。
lncRNA研究也在从单个脂肪细胞走向器官间相互作用。肝脏负责脂质合成和转运,骨骼肌是能量消耗的重要组织,细胞外囊泡则可以携带RNA在不同组织之间传递信息。部分循环lncRNA的表达水平与肥胖、脂肪肝或胰岛素抵抗相关,因此被研究为潜在的生物标志物[6]。如果这些分子经过充分验证,今后或可用于辅助判断代谢异常的类型,或观察运动和药物干预后的变化。但相关性并不等同于诊断价值,候选标志物还需要在更大样本和不同人群中重复验证。
运动研究为观察lncRNA变化提供了较为直接的条件。运动过程中,肌肉收缩、血流和激素水平都会发生变化,并进一步影响多种组织的基因表达。在高脂饮食诱导的肥胖小鼠中,8周有氧训练降低了与脂肪生成有关的lncRNA SRA表达,同时伴随体重、白色脂肪重量和血脂指标改善[7]。在肥胖儿童和青少年的研究中,12周运动干预后,lncRNA MALAT1相关调控轴的变化与血管内皮功能改善存在联系[8]。这些结果提示,lncRNA可能成为观察运动应答的候选指标,但现有证据还不足以据此制定个体化运动处方。
瞄准RNA能否管住脂肪
从干预角度看,lncRNA大致存在两种调节方向。对于表达过高并促进脂肪异常沉积或炎症的lncRNA,可利用反义寡核苷酸、RNA干扰或CRISPR干扰降低其表达;对于具有产热、改善胰岛素敏感性等作用的lncRNA,则可以考虑补充功能片段,或借助载体提高其表达[9]。目前,一些细胞和动物实验已经观察到体重、肝脏脂肪沉积或胰岛素敏感性的变化。不过,这些结果仍处于临床前阶段,尚不能直接解释为可供使用的肥胖治疗方案。
lncRNA干预面临的首要问题是如何把药物准确送到目标细胞。RNA分子进入体内后容易被降解,即使使用载体保护,也可能分布到不需要干预的组织。剂量、脱靶效应、免疫反应及长期调节是否可逆,都需要逐项评估。物种差异则增加了另一层困难:许多lncRNA在人和小鼠之间的序列相似度较低。为解决这一问题,研究者开始寻找序列不同但功能相近的lncRNA模块[10]。这种思路有助于筛选更可能具有人体应用价值的靶点,但仍离临床验证较远。
要把这些分子研究清楚,技术也需要继续改进。单细胞测序可以区分脂肪组织中不同细胞的表达特征,空间转录组能够显示这些细胞在组织中的位置,长读长测序则有助于识别同一lncRNA的不同转录本。人工智能可以用于预测RNA结构及其潜在结合分子,但预测结果必须通过功能实验确认。在递送方面,脂质纳米颗粒和工程化细胞外囊泡也在不断改进。候选分子筛选、功能验证、靶向递送和安全性评价缺少任何一环,都很难进入临床研究。
回过头看,脂肪细胞的形成只是故事的开头。成熟细胞还要决定是储存脂肪、释放脂肪酸,还是把一部分能量转化为热;这些变化又会影响肝脏、骨骼肌等器官。研究者在不同环节找到的lncRNA,有的参与细胞分化,有的与产热或脂质代谢有关。把这些发现连起来看,就能理解为什么某条lncRNA在某个实验里似乎有益,换了组织或营养条件,作用却可能不同。脂肪组织内部究竟发生了什么,才会一步步拖垮全身代谢?天津体育学院赵云罡团队系统梳理了lncRNA在脂肪细胞生成、脂肪分解与能量平衡中的调控作用,以及它如何影响白色脂肪、棕色脂肪和肝脏等组织,并探讨了以lncRNA为靶点的抗肥胖治疗策略。(详情请点击阅读原文)
可以设想两个体重相近的人:一个人的脂肪主要储存在皮下,另一个人的肝脏和骨骼肌也开始堆积脂质--他们面临的代谢风险,可能并不相同。研究lncRNA,正是想弄清:脂肪细胞在什么情况下还能正常储存多余能量,又在什么时候会把压力转嫁给其他器官。眼下,许多线索仍来自细胞或动物实验,离临床检测和治疗还有距离。如果今后能在人体研究中得到反复验证,其中一些分子或许能帮助医生识别代谢异常,或用于观察运动、药物等干预的效果。
结 语
目前,lncRNA与脂肪生成和代谢之间的关系仍有许多问题尚未厘清。部分研究结果在不同模型中并不一致,一些候选分子的作用机制也有待进一步验证。但这些不确定性并不意味着lncRNA研究缺乏价值。相反,它为理解脂肪组织如何感受营养变化、如何与其他器官交流提供了新的线索。随着研究对象从单个分子逐步扩展到细胞和器官网络,我们对肥胖及相关代谢疾病的认识也将更加具体。下一步需要做的,是明确每个调控环节在什么条件下发挥作用。
参考文献
[1] World Health Organization. Obesity and overweight[EB/OL]. Geneva: World Health Organization,2025[2026-09-21]. https://www.who.int/news-room/fact-sheets/detail/obesity-and-overweight.
[2] Ferrer J, Dimitrova N. Transcription regulation by long non-coding RNAs: mechanisms and disease relevance. Nat Rev Mol Cell Biol, 2024, 25(5): 396-415
[3] Sun L, Goff L A, Trapnell C, et al. Long noncoding RNAs regulate adipogenesis. Proc Natl Acad Sci U S A, 2013, 110(9): 3387-3392
[4] Alvarez-Dominguez J R, Bai Z, Xu D, et al. De novoreconstruction of adipose tissue transcriptomes reveals long non-coding RNA regulators of brown adipocyte development. Cell Metab, 2015, 21(5): 764-776
[5] Tran K V, Brown E L, DeSouza T, et al. Human thermogenic adipocyte regulation by the long noncoding RNA LINC00473. Nat Metab, 2020, 2(5): 397-412
[6] Sun J, Ruan Y, Wang M, et al. Differentially expressed circulating LncRNAs and mRNA identified by microarray analysis in obese patients. Sci Rep, 2016, 6: 35421
[7] Wu B, Ding J, Chen A, et al. Aerobic exercise improves adipogenesis in diet-induced obese mice via the lncSRA/p38/JNK/PPARγ pathway. Nutr Res, 2022, 105: 20-32
[8] Zhao W, Yin Y, Cao H, et al. Exercise improves endothelial function viathe lncRNA MALAT1/miR-320a axis in obese children and adolescents. Cardiol Res Pract, 2021, 2021: 8840698
[9] Vu T D, Lin S C, Wu C C, et al. RNA therapeutics for metabolic disorders. In RNA Therapeutics Part A. Amsterdam: Elsevier2024: 181-196
[10] Huang W, Xiong T, Zhao Y, et al. Computational prediction and experimental validation identify functionally conserved lncRNAs from zebrafish to human. Nat Genet, 2024, 56(1): 124-135
作者简介
库礴炜成:天津体育学院运动健康学院本科生。研究方向:运动与代谢。
(作者:库礴炜成)
(本文来源于公众号:生物化学与生物物理进展)
附件下载:
上一篇: